β趋化因子通过小胶质细胞活化引起小鼠感光细胞凋亡的实验研究
健康科普 好医生 2024-05-25 14:28:28β趋化因子通过小胶质细胞活化引起小鼠感光细胞凋亡的实验研究
【摘要】目的 观察β趋化因子对小鼠小胶质细胞的活化及诱导感光细胞凋亡的作用。设计 实验性研究。研究对象β趋化因子、小鼠BV-2小胶质细胞系及661W感光细胞系。方法 将β趋化因子(RANTES、MIP-1α及MIP-1β)加入到BV-2细胞中,观察BV-2细胞活化反应。然后将被激活的BV-2细胞培养液上清加入661W细胞中,观察661W的凋亡情况。或将β趋化因子直接加入到661W细胞中,观察其凋亡情况。事先加入β趋化因子抑制剂met-RANTES后,重复上述操作。主要指标 钙内流、ROS及NO的产生、TUNEL阳性感光细胞百分比。结果 β趋化因子加入BV-2细胞后,细胞内钙流曲线明显上升、细胞外ROS及NO产生较对照组均明显增高(P<0.01);将激活后的BV-2细胞上清加入到661W细胞中,后者凋亡率增加30%。β趋化因子直接加入661W细胞中,上述指标无明显变化。在加入β趋化因子之前先加入其抑制剂met-RANTES,BV-2细胞的ROS产生较未加抑制剂组明显降低(P<0.01)、NO产生较未加抑制剂组降低(P=0.0187),661W细胞凋亡明显减少。结论 β趋化因子可活化小鼠小胶质细胞导致感光细胞凋亡。β趋化因子抑制剂可抑制遗传性视网膜变性小鼠小胶质细胞活化,保护感光细胞。(眼科,2017,26:270-275)
【关键词】β趋化因子;小胶质细胞;感光细胞;BV-2细胞系;661W细胞系
原发性视网膜色素变性(retinitis pigmentosa,RP)是-组以感光细胞进行性选择性丧失为特征的遗传性致盲性眼病。由于基因变异导致感光细胞变性的机制不清,目前仍无有效的治疗方法。研究表明,小胶质细胞活化在中枢神经系统及视网膜疾病的发生发展中起重要致病作用[1-4]。我们以往研究显示:在视网膜变性过程中,β趋化因子包括单核细胞趋化蛋白(monocyte chemotactic protein,MCP)1、3、1α、1β和调节活化正常T细胞表达和分泌的趋化因子(regutated uopon activation normal T-cell expressed and secreted,RANTES)在视网膜上的表达显著升高,早于感光细胞凋亡高峰期,提示小胶质细胞及其趋化因子等炎性因素在rd小鼠视网膜变性过程中发挥重要作用[5]。然而,趋化因子与小胶质细胞活化及感光细胞凋亡的因果效应关系仍存在争议。本研究目的是进-步证实在视网膜变性过程中,β趋化因子通过活化小胶质细胞引起感光细胞凋亡的作用机制。
材料与方法
一、材料
(一)细胞株
小鼠BV-2细胞系(购于中国医学科学院细胞生物研究所),小鼠661w细胞系(美国Oklahoma大学AL-Ubaidi教授赠与)。
(二)主要试剂及仪器
小牛血清(Hyclone)、青霉素-链霉素(Hyclone)、RPMI1640培养基(Hyclone)、DMEM培养基(Hyclone)、兔抗小鼠C-C趋化因子受体5(C-C chemokine receptor type 5,CCR5)多克隆抗体(Santacruz)、TUNEL试剂盒(Roche)、TRITC荧光二抗(Vector)、Griess试剂(Promega)、RANTES(RD)、MIP-1α(Assaybiotech)、MIP-1β(Peprotech)、met-RANTES(RD)、二氧化碳培养箱(Thermo)、荧光显微镜(Leica)、LeicaQwinV3图像分析软件(Leica)、酶标仪(Biorad)、分光光度计(Thermo)、动态图像显微系统(Leica)。
二、实验方法
(一)BV-2及661w细胞培养
BV-2细胞培养:BV-2细胞系为永久性小鼠小胶质细胞系,可结构性地表达CCR5[6],该受体为β趋化因子受体。细胞在含有10%热灭活的胚胎小牛血清及0.5%青霉素-链霉素的RPMI1640培养液中培养,环境条件为37℃、5%CO2和95%的空气。
661w细胞培养:661w细胞系是能被多种感光细胞标记物标记的永久性小鼠感光细胞系。细胞在含有10%小牛血清和1%的青霉素-链霉素的DMEM培养基中培养,环境条件为37℃、5%CO2和95%的空气。
(二)免疫荧光
证实BV-2细胞CCR5受体的表达。BV-2细胞爬片培养4天后,经4%多聚甲醛固定10分钟,0.1mol/L PBS(pH=7.40)漂洗5分钟×3次,0.5% Triton-100 PBS穿透30分钟,正常羊血清工作液封闭30分钟,倾去血清,勿洗。滴加兔抗小鼠CCR5多克隆抗体(1:100)4℃孵育过夜。用PBS代替-抗孵育作为阴性对照。次日PBS漂洗5分钟×3次,孵育抗兔TRITC二抗(1:200)37℃ 30分钟。荧光显微镜568nm波长下观察TRITC红色荧光并照相。
(三)TUNEL染色
TUNEL染色操作步骤及试剂采用Roche的荧光TUNEL试剂盒。将爬片培养的BV-2细胞和661w细胞分别经4%多聚甲醛固定10分钟,0.1mol/L PBS(PH=7.40)漂洗5分钟×3次,0.5% Triton-100 PBS穿透30分钟。滴加FITC标记的TUNEL反应混合物37℃孵育1小时,阴性对照仅加入50μl荧光素标记的dUTP,阳性对照先加入100μlDNase1,室温10分钟,再加入TUNEL反应混合物,后续步骤相同。PBS漂洗5分钟×3次。荧光显微镜488nm波长下观察FITC绿色荧光并照相。
(四)细胞外NO含量测定
采用Griess法上清液100μl与Griess试剂混合,25℃15分钟后形成有色物质,利用酶标仪测定570nm波长处的吸收率。一氧化氮(nitricoxide,NO)水平由氮化钠的标准曲线计算得来,以氮浓度(μM)表示。
(五)细胞外及细胞内ROS含量测定
BV-2细胞外活性氧(reactive oxidative specis,ROS)含量测定:用超氧化物歧化酶(SOD)抑制性细胞色素C减少法测定。细胞(1×10⁵)在24孔板内与0.5ml含有细胞色素C(80μl)及N-fMLP(0.5μM)的HBSS37℃孵育足够长的时间。超氧化物歧化酶(10μl,3mg/ml)加入分光光度仪对照孔中,550nm波长测定减少的细胞色素C(摩尔萃灭效率,21000M-1cm-1)。
661w细胞内ROS含量测定:661w细胞贴壁和扩散后给予趋化因子100nM 2-5天。细胞内产生ROS通过双氯荧光乙酰乙酸染料(DCFH/DA)测定。细胞在室温下承载DCF染料(10μmol/L)15分钟。细胞内ROS由酶标仪测定,激发/发射波长为480/520nm。以光密度值来表示其含量。
(六)细胞内钙流测定
利用动态图像显微系统测定趋化因子与受体作用后细胞内钙浓度变化,以证实受体活性。细胞在盖玻片生长4天,承载含有4mM Fura-2 AM 的PBS37℃孵育1小时。冲洗后,加以RANTES,MIP-1α或MIP-1β,每种趋化因子设三个浓度,依次为10、100、1000nM。每两秒钟记录-次荧光影像并根据340nm及380nm荧光强度比值表示细胞内钙流。
(七)抑制试验
在向BV-2细胞或661w细胞内加入β趋化因子前给予抑制剂met-RANTES(50 nM),观察BV-2细胞内外ROS及细胞外NO产生的变化,及661w细胞的凋亡情况。
三、统计学分析
所有数据表示为平均数±标准差。采用SPSS13.1软件。采用独立样本t检验计算β趋化因子刺激BV-2细胞产生NO或ROS与空白对照组的差异,采用配对t检验计算加入抑制剂met-RANTES与未加抑制剂组NO或ROS的释放量差异。P<0.05认为差异有统计学意义。
结果
一、BV-2细胞表面CCR5的表达
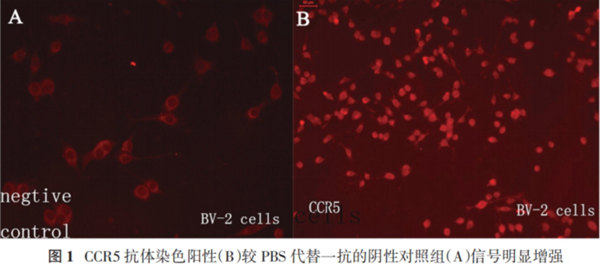
CCR5是β-趋化因子的受体,分布在细胞表面。将爬片培养4天的BV-2细胞进行免疫荧光染色,结果证实BV-2细胞表面表达CCR5(图1)。
二、β趋化因子对小胶质细胞的活化及对感光细胞的促凋亡作用
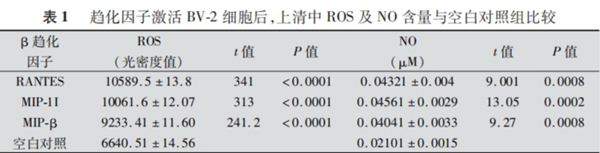
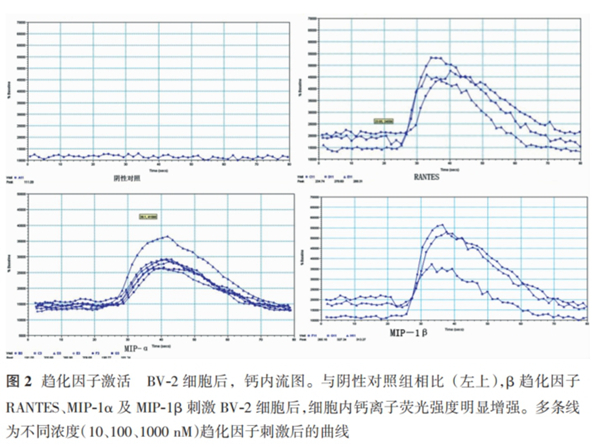
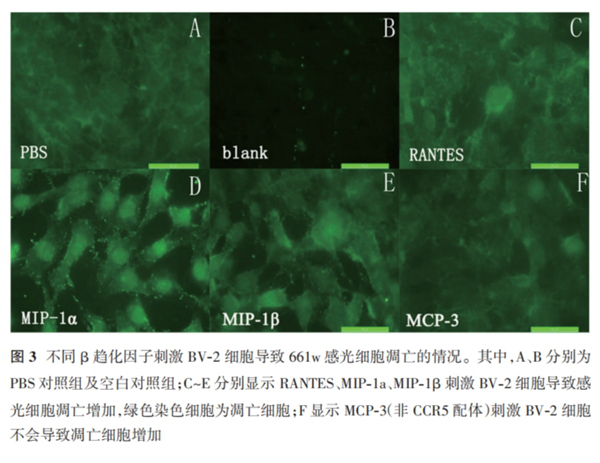
将趋化因子RANTES,MIP-1α或MIP-1β(10、100、1000 nM)加入到 BV-2 细胞培养液中,刺激BV-2细胞生长 4天后,检测结果显示:BV-2细胞内钙内流增加(图2)。取100 nM趋化因子RANTES、MIP-1α 或 MIP-1β 刺激 BV-2细胞并重复3次,用PBS刺激BV-2细胞作为空白对照,测定上清中ROS及NO含量与空白对照组比较明显升高(P均<0.01)(表1)。将三种趋化因子诱导活化的BV-2细胞上清分别加入到661w细胞中,用TUNEL法对661w 细胞进行染色。观察不同β趋化因子刺激BV-2细胞导致661w感光细胞凋亡的情况。如图3所示,随机选取100个视野,对细胞总数及TUNEL阳性细胞进行计数,计算TUNEL阳性细胞与细胞总数的百分比。结果显示:RANTES、MIP-1α、MIP-1β刺激BV-2细胞导致感光细胞凋亡增加约30%。而MCP-3(非CCR5配体)刺激BV-2细胞不会导致凋亡细胞增加(图3)。β趋化因子直接刺激661w细胞未引起钙流、细胞内ROS产生及细胞凋亡(数据未显示)。
三、β趋化因子抑制剂met-RANTES对感光细胞的保护作用
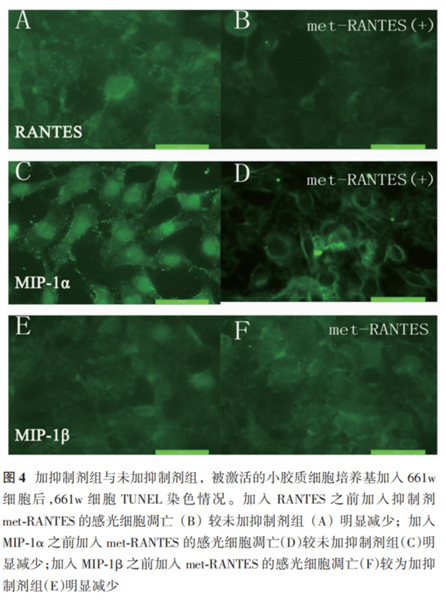
抑制实验:加入趋化因子前,对BV-2细胞给予50nmol/ml的met-RANTES,再将活化的BV-2细胞上清加入到661w细胞中,观察BV-2细胞内外ROS释放及细胞外NO产生的情况及661w细胞凋亡情况。结果显示,BV-2细胞释放的ROS较加入前明显减少(P<0.01)(表2),NO释放量较加入前减少(P<0.05)(表3)。说明met-RANTES对BV-2细胞活化具有抑制作用,使其释放的ROS及NO减少。TUNEL染色随机选取100个视野进行细胞计数:与未加抑制剂组的661w细胞凋亡数量相比,抑制剂组凋亡减少35%~47%,表现出对661w细胞的保护作用(图4)。
讨论
近年来,小胶质细胞在脑及视网膜退行性变性中的活化作用已经引起人们广泛关注和研究。小胶质细胞是中枢神经系统固有的免疫活性细胞,参与维护机体正常的微环境。当受到各种损伤及慢性疾病刺激时迅速活化,除了增殖、移行、形态改变及上调表达多种免疫大分子外,可产生并释放大量具有神经细胞毒性及致炎作用的物质,参与多种脑退行性疾病的发生[1]。体内及体外研究均显示活化的视网膜小胶质细胞可杀伤感光细胞。但活化通路尚不明确[6]。本研究结果显示:β趋化因子加入BV-2细胞后,细胞内钙流、细胞外ROS及NO产生均明显增高;将激活后的BV-2细胞上清加入到661w细胞中,后者凋亡增加30%。上述结果表明:在遗传性视网膜变性过程中,组织产生的趋化因子可能活化视网膜小胶质细胞,后者通过释放ROS及NO引起感光细胞凋亡,因此在视网膜感光细胞变性中发挥重要作用。
β趋化因子可能通过激活小胶质细胞引起感光细胞凋亡。以往我们体内研究结果表明:rD小鼠在感光细胞凋亡早期已有β趋化因子产生增加,起始及表达高峰期均早于或平行于小胶质细胞活化及感光细胞凋亡[5]。β趋化因子的靶向细胞为吞噬细胞(包括小胶质细胞),趋化因子与其受体结合才能使该细胞发生活化反应,其中细胞内钙流增加是该类细胞因子刺激最具特征性的标志并广泛应用于研究功能性趋化因子受体的表达[7]。本研究进-步证实了该类趋化因子对小胶质细胞的活化作用。
视网膜趋化因子的来源尚不明确。趋化因子可能来源于由于基因缺陷而受损的感光细胞;也可能由活化的小胶质细胞释放大量趋化因子进-步激活自身而来。这-机制有待于进-步体内实验如免疫组化证实。
小胶质细胞通过释放ROS及NO导致感光细胞凋亡。小胶质细胞是中枢神经系统的组织吞噬细胞,在病理条件下可迅速活化并释放大量细胞毒性物质导致神经元变性包括感光细胞凋亡。细胞毒性物质包括ROS、NO及肿瘤坏死因子-α(tumor neccosis factor α,TNF-α)等[2]。越来越多的研究表明,在中枢神经系统神经元变性过程中,活化的小胶质细胞通过释放ROS引起神经元毒性反应,各种毒性刺激转化为ROS是共同的传导通路。本研究证实了RANTES、MIP-1α及MIP-1β三种β趋化因子可使小胶质细胞活化并释放ROS及NO,且与对照组相比,感光细胞凋亡明显增加。
β趋化因子不会直接导致661w细胞凋亡。有研究显示:661w细胞经处理导致钙流增加后发生氧化应激反应,加重感光细胞凋亡[2]。然而,本研究中以β趋化因子作用感光细胞未引起钙流反应及细胞内ROS产生,也未引起细胞凋亡。说明感光细胞的凋亡,是通过小胶质细胞激活并释放某种毒性物质所致,并非β趋化因子直接诱发形成。
β趋化因子抑制剂可以抑制小胶质细胞活化,保护感光细胞。本研究显示:提前加入β趋化因子抑制剂met-RANTES,Bv-2细胞ROS、NO指标较未加组明显降低,661w细胞凋亡明显减少。β趋化因子受体CCR5及CCR1抑制剂的met-RANTES被证实在实验性自身免疫性脑脊髓炎慢性平台期可缓解神经性病损[8]。met-RANTES是人CCR1及CCR5有效的拮抗剂,可以竞争性结合趋化因子受体而抑制RANTES和MIP-1α的趋化作用,特异性抑制其对单核细胞及小胶质细胞的趋化作用。β趋化因子受体抑制剂阻断β趋化因子与其受体的结合,阻断受体活化后的信号传导通路及引起的氧化损伤反应,因此可能成为遗传性视网膜变性的治疗靶点。
总之,本研究结果显示:β趋化因子通过活化小胶质细胞释放神经元毒性物质杀伤感光细胞。抑制趋化因子产生可减少感光细胞凋亡,从而为该病的治疗提供新的治疗途径。由于不考虑特定的基因缺陷类型,可能使该疗法具有广泛的应用价值。
作者简介
曾惠阳,北京同仁医院眼科研究所主任医师,研究员,研究生导师,北京市卫生系统高层次卫生技术人才。本科毕业于华西医科大学临床医学系,北京大学医学部获得眼科学博士学位。毕业后前往美国约翰.霍普金斯大学医学院Wilmer 眼科研究所从事三年博士后研究并进修眼底内科。第一/通讯作者发表学术论文50余篇,包括《JAMA Ophthalmology》、《IOVS》、《Neuroscience》,《Eye》等SCI论文30余篇。先后主持国家自然科学基金、北京市自然科学基金、海外基金11项;参与的科研项目获得中华医学科技奖一等奖;第一发明人获国家发明专利3项,转化1项。
参考文献
[1]Dickson DW,Lee SC,Mattiace LA,et al.Microglia and cytokines in newrological disease with special reference to AIDS and Alzheimer’s disease.Glia,1993,7(1):75-83.
[2]Cartier L,Hartley O,Dubois-Dauphin M,et al.Chemokine receptors in the central nervous system:role in brain inflammation and neurodegenerative diseases.Brain Res Brain Res Rev,2005,48(1):16-42.
[3]Thanos S.Sick photoreceptors attract activated microglia from the ganglion cell layer:a model to study the inflammatory cascades in rats with inherited retinal dystrophy.Brain Res,1992,588(1):21-28.
[4]Ng TF,Streilein JW.Light induced migration of retinal microglia into the subretinal space.Invest Ophthalmol vis Sci,2001,42(13):3301-3310.
[5]Zeng HY,Zhu XA,Zhang C,et al.Identification of sequential events and factors associated with microglial activation,migration,and cytotoxicity in retinal degeneration in rd mice.Invest Ophthalmol Vis Sci,2005,46(8):2992-2999.
[6]Roque RS,Rosales AA,Jingjing L,et al.Retina-derived microglialcells induce photoreceptor cell death in vitro.Brain Res,1999,836(1-2):110-119.
[7]Michaelis M,Nieswandt B,Stegner D,et al.STIM1,STIM2,and Orai1 regulate store-operated calcium entry and purinergic activation of microglia.Glia,2015,63(4):652-663.
[8]Savarin-vuaillat C,Ransohoff RM.Chemokines and chemokine receptors in neurological disease:raise,retain,or reduce?.Neurotherapeutics,2007,4(4):590-601.
蚂蚁集团加速推进AI医疗健康,推出全新大模型应用「AQ」
一生4个阶段的护牙要点,你知道吗?